


 Glosario
Apiospora hysterina (Sacc.) Pintos & P. Alvarado
Hongo
Apiospora hysterinaFamilia: Apiosporaceae
Hospedero
Phyllostachys aureaPoaceae · Mallorca y Galicia
 Imágenes del hongo
Haz clic en una imagen para ampliarla
 Características macroscópicas
Morfología sexual
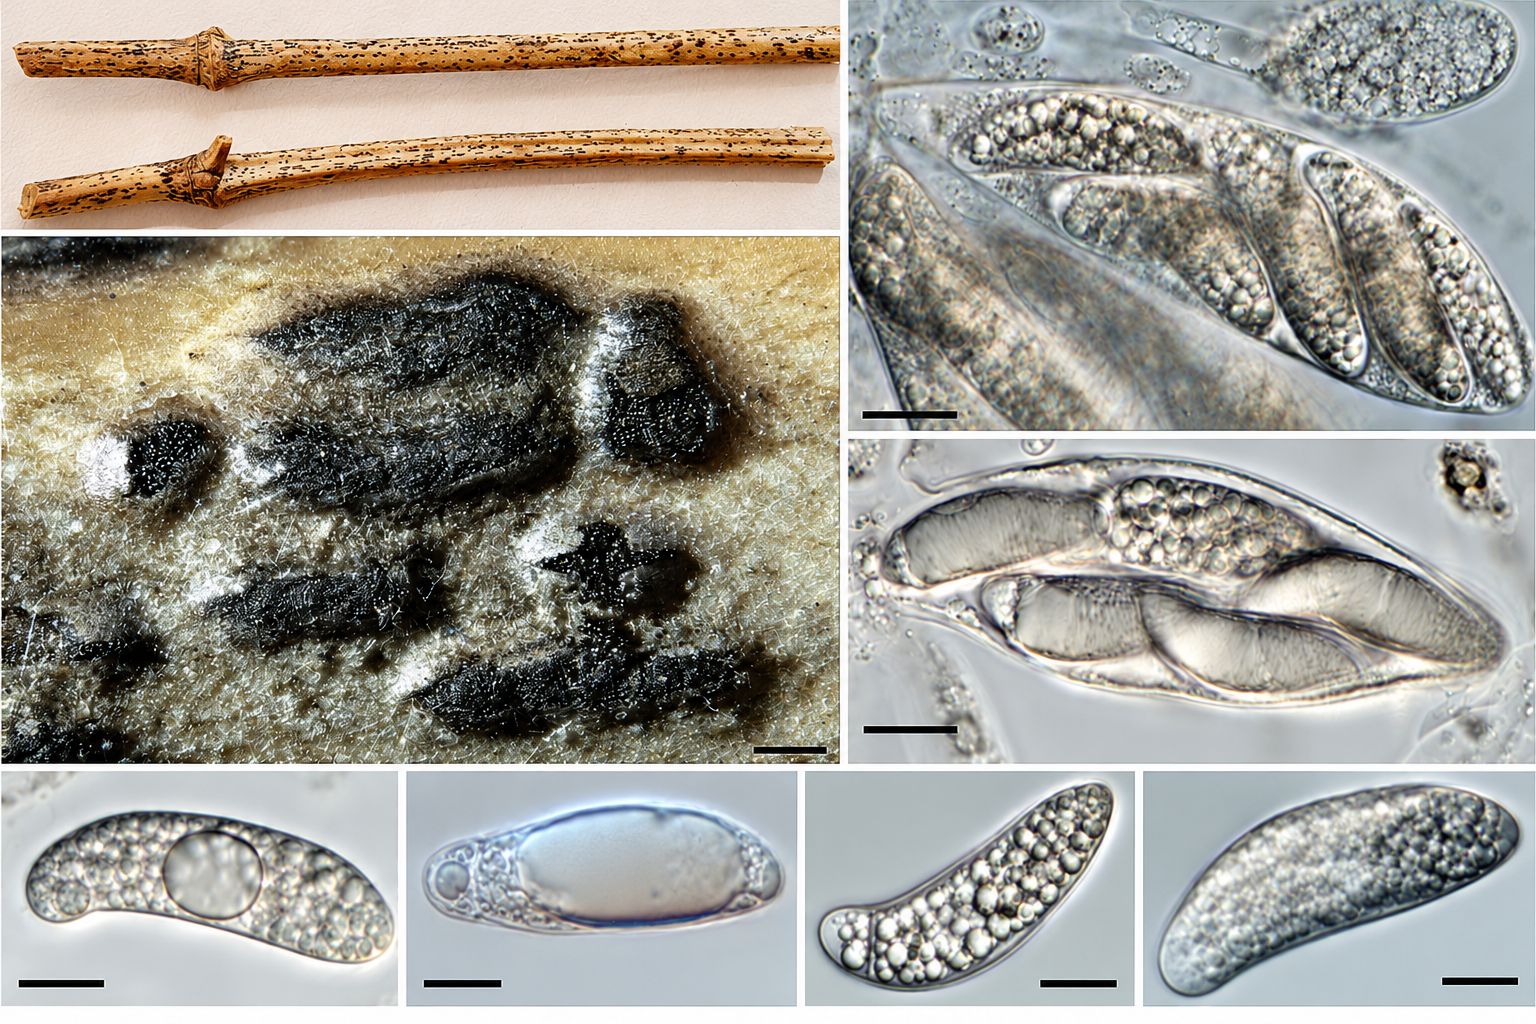
Estromas: negros, fusiformes, formando hileras de ascomas periteciales densamente agrupados, dispuestos paralelamente al eje longitudinal del hospedero, de (400–)600–2500(–3000) × (250–)320–450(–550) µm (n = 30).
Ascomas: globosos a subglobosos, con la base aplanada, de color pardo negruzco, de (130–)250–290(–320) µm de diámetro (n = 30). Ostíolo único, central, de 10–30 µm de diámetro, con un canal perifisado de 20–35 µm de longitud.
Morfología asexual
Conidiomas: dispuestos alrededor de los estromas de la fase sexual, paralelos al eje longitudinal del tallo, subepidérmicos, abriéndose mediante una fisura longitudinal de la epidermis que deja expuesta una masa conidial negra, de (450–)630–950(–1000) × (275–)345–550(–600) µm (n = 35).
 Características microscópicas
Morfología sexual
Peridio: constituido por 3–4 capas de células dispuestas en textura angularis, de color pardo oscuro externamente e hialinas hacia el interior.
Perífisis: anchas e incoloras.
Hamatecio: compuesto por paráfisis abundantes, anchas, septadas, de aspecto hifoide y tempranamente delicuescentes.
Ascos: unitunicados, octosporados, claviformes a anchamente cilíndricos, con pedicelo poco diferenciado, ápice redondeado, pared delgada y sin aparato apical, de (76–)85–98(–115) × (20–)22–26(–28) µm (n = 22).
Ascosporas: dispuestas en una a tres series, hialinas, apiosporadas, bicelulares, lisas, fusiformes, elipsoidales o reniformes, rectas o curvadas, ocasionalmente con una gota interna. La parte más ancha se sitúa en la región central de la célula mayor. Algunas presentan una vaina mucilaginosa. Miden (28–)32–34(–38) × (8–)9–11(–13) µm (n = 35); célula basal de 5–7 µm.
Morfología asexual
Micelio: ramificado y septado.
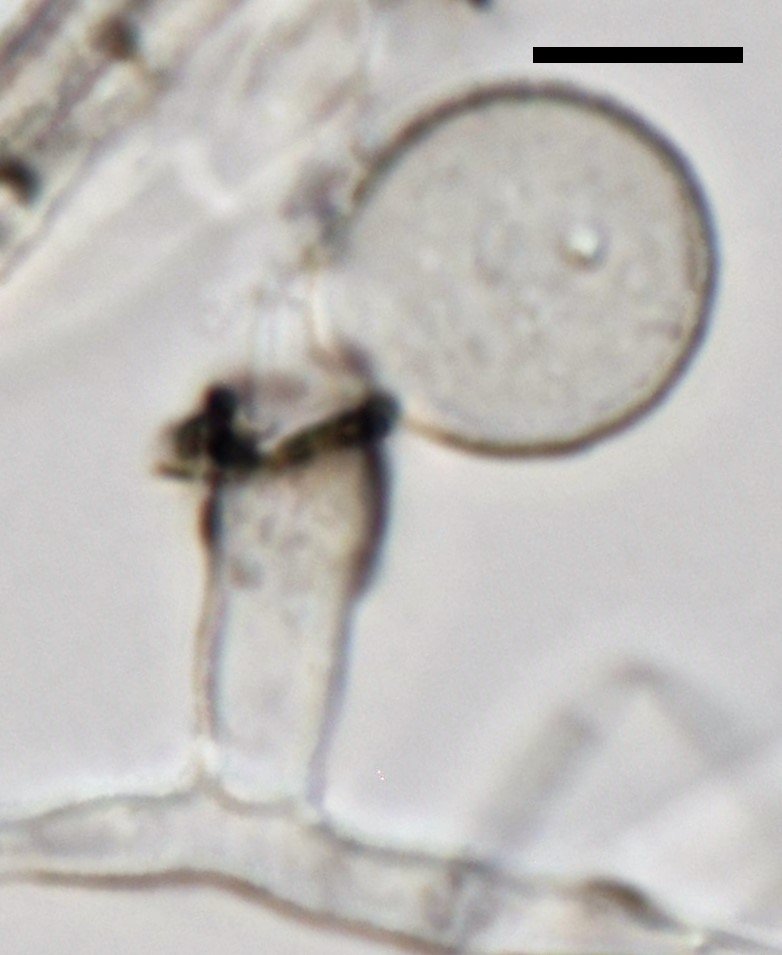
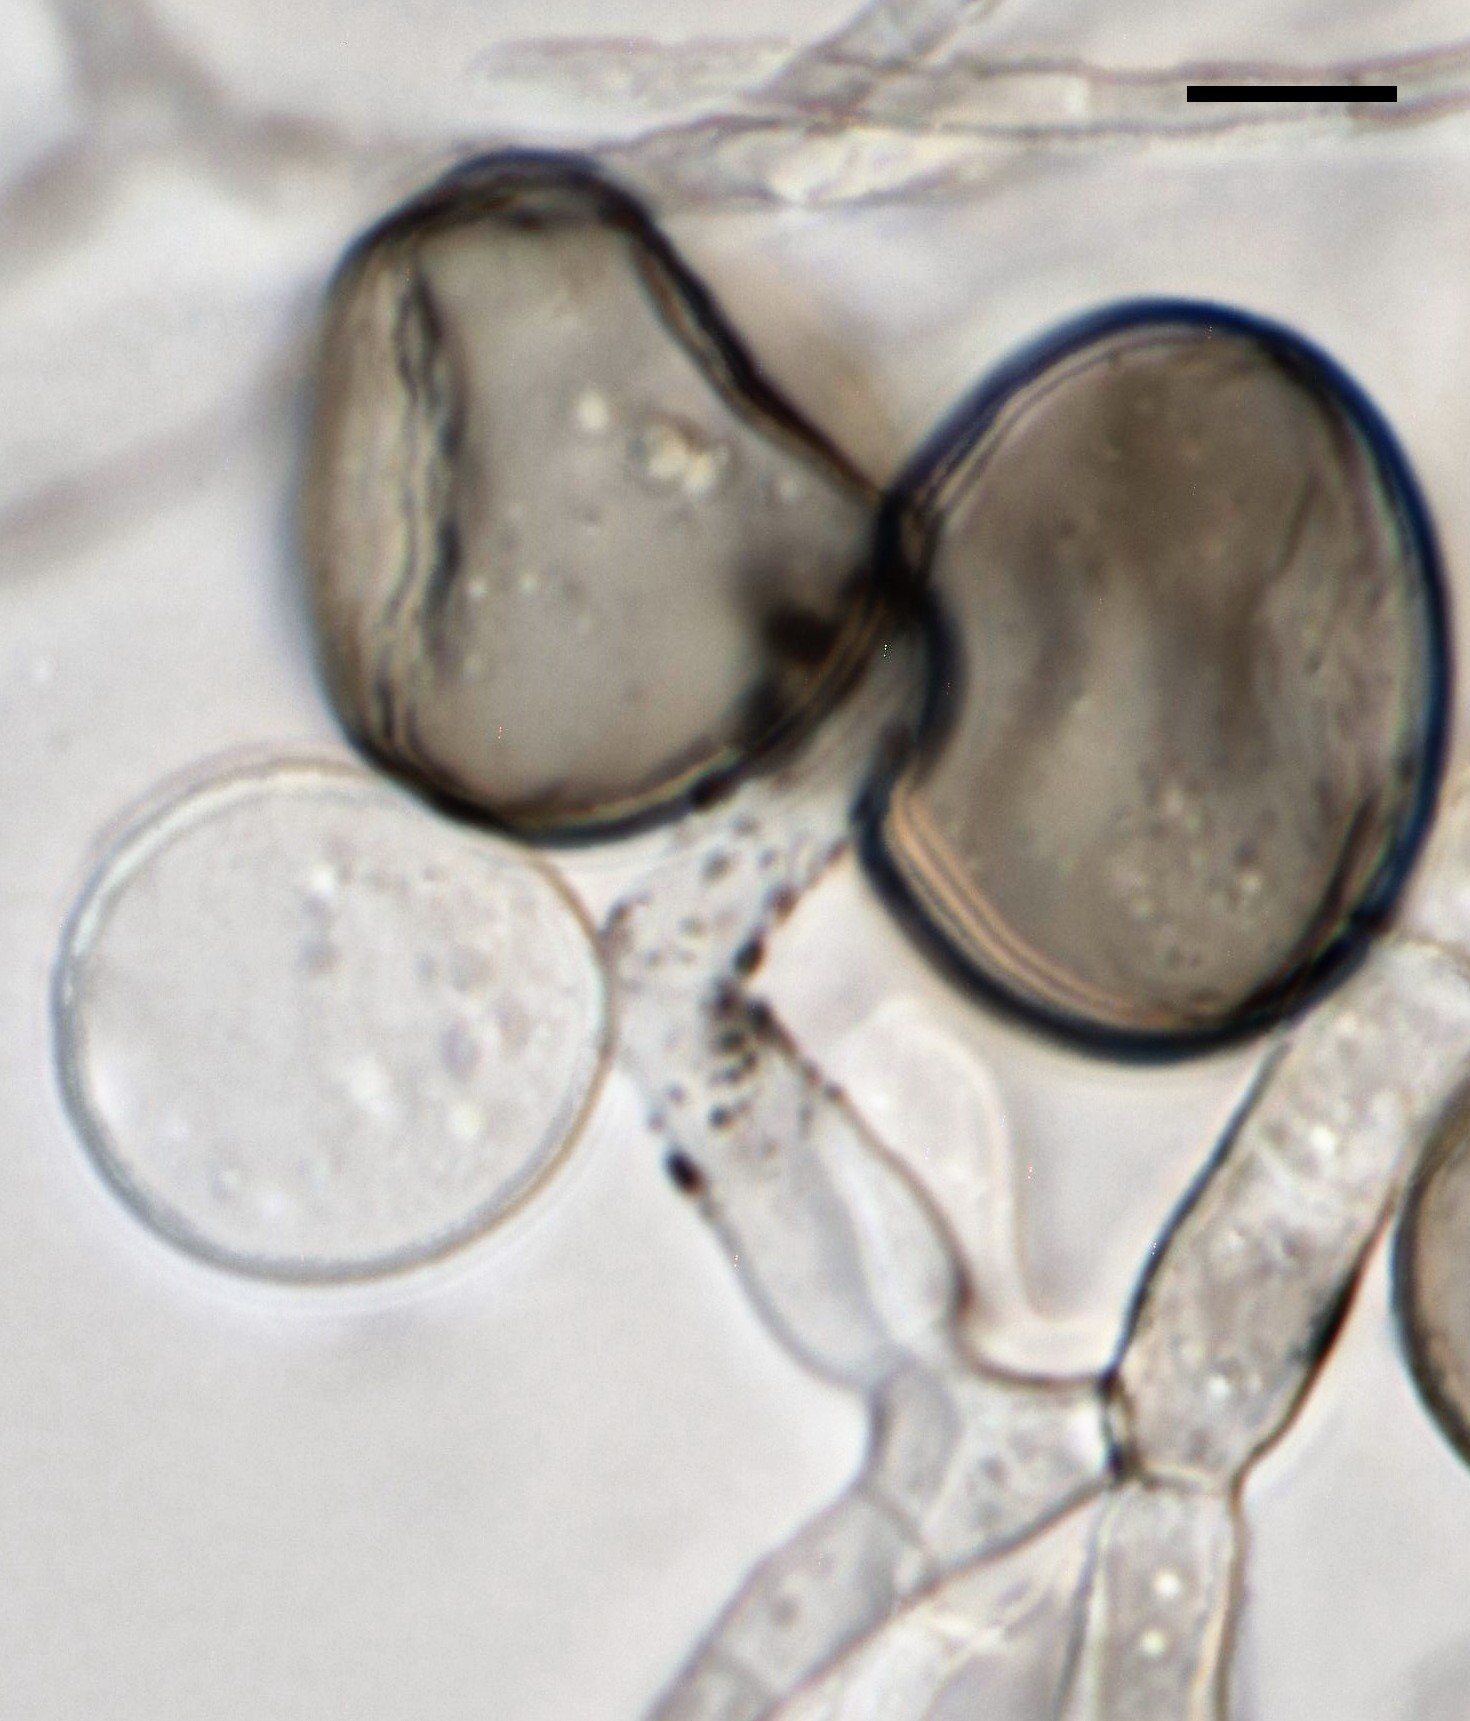
Células madres de los conidióforos: originadas a partir del estroma, ampuliformes, lageniformes, cupuliformes o cilíndricas, ocasionalmente con pigmentación granular en el ápice, de (5–)6–10(–16) × (3–)5–7(–8) µm (n = 24).
Conidióforos: de crecimiento basáuxico, poliblásticos, cilíndricos, hialinos a pardo claros, lisos o con pigmentación granular distribuida a lo largo de su superficie, rectos o flexuosos, septados o aseptados, pudiendo superar los 90 µm de longitud, de 2–4 µm de anchura (n = 43).
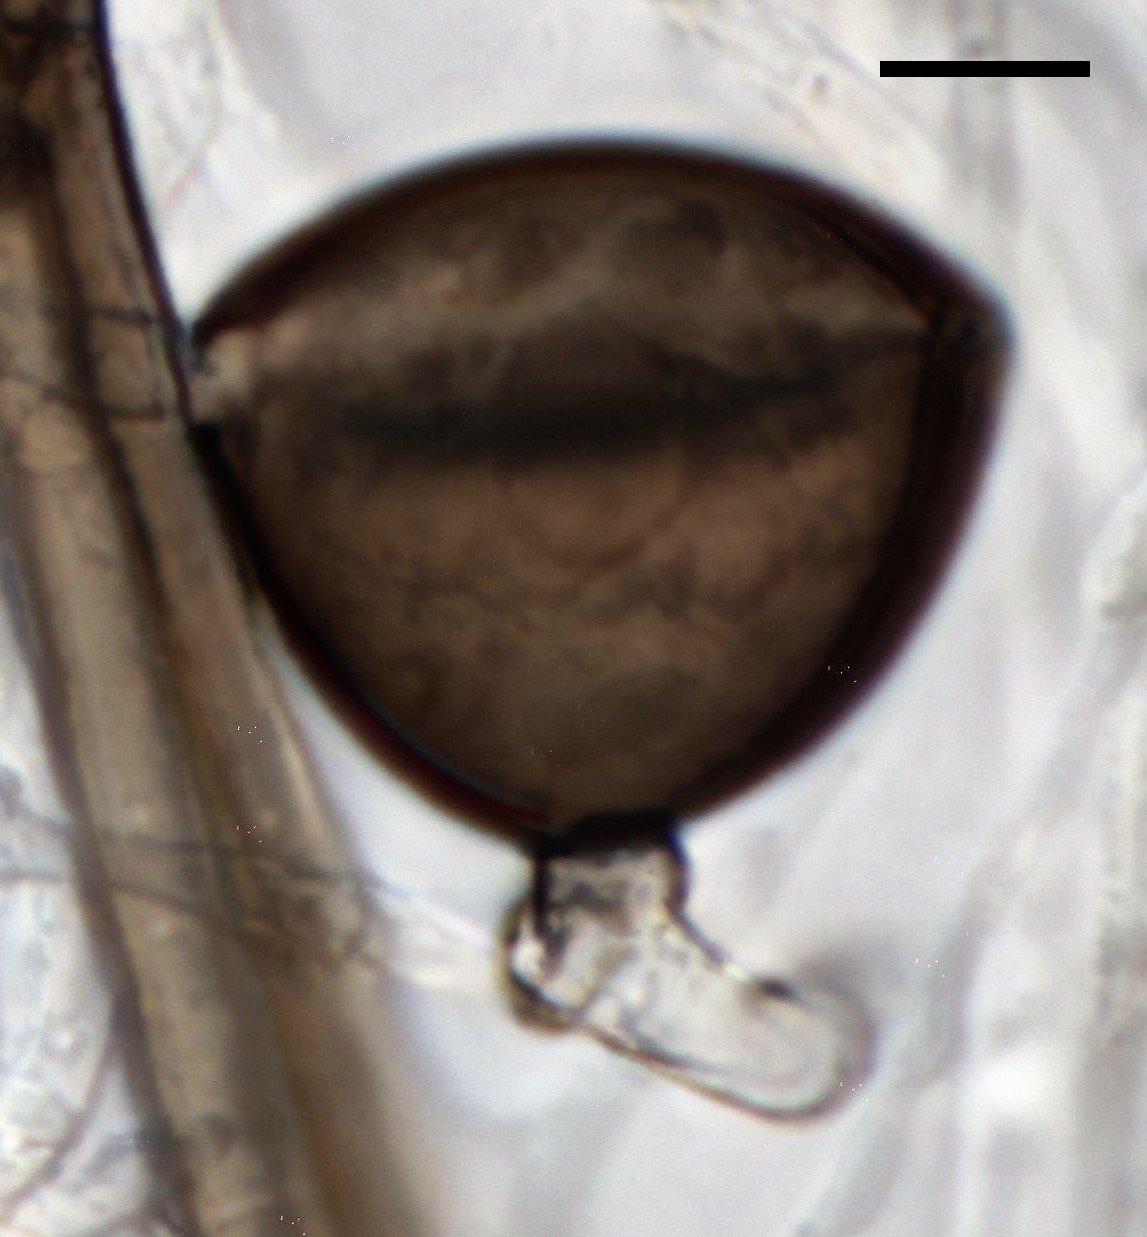
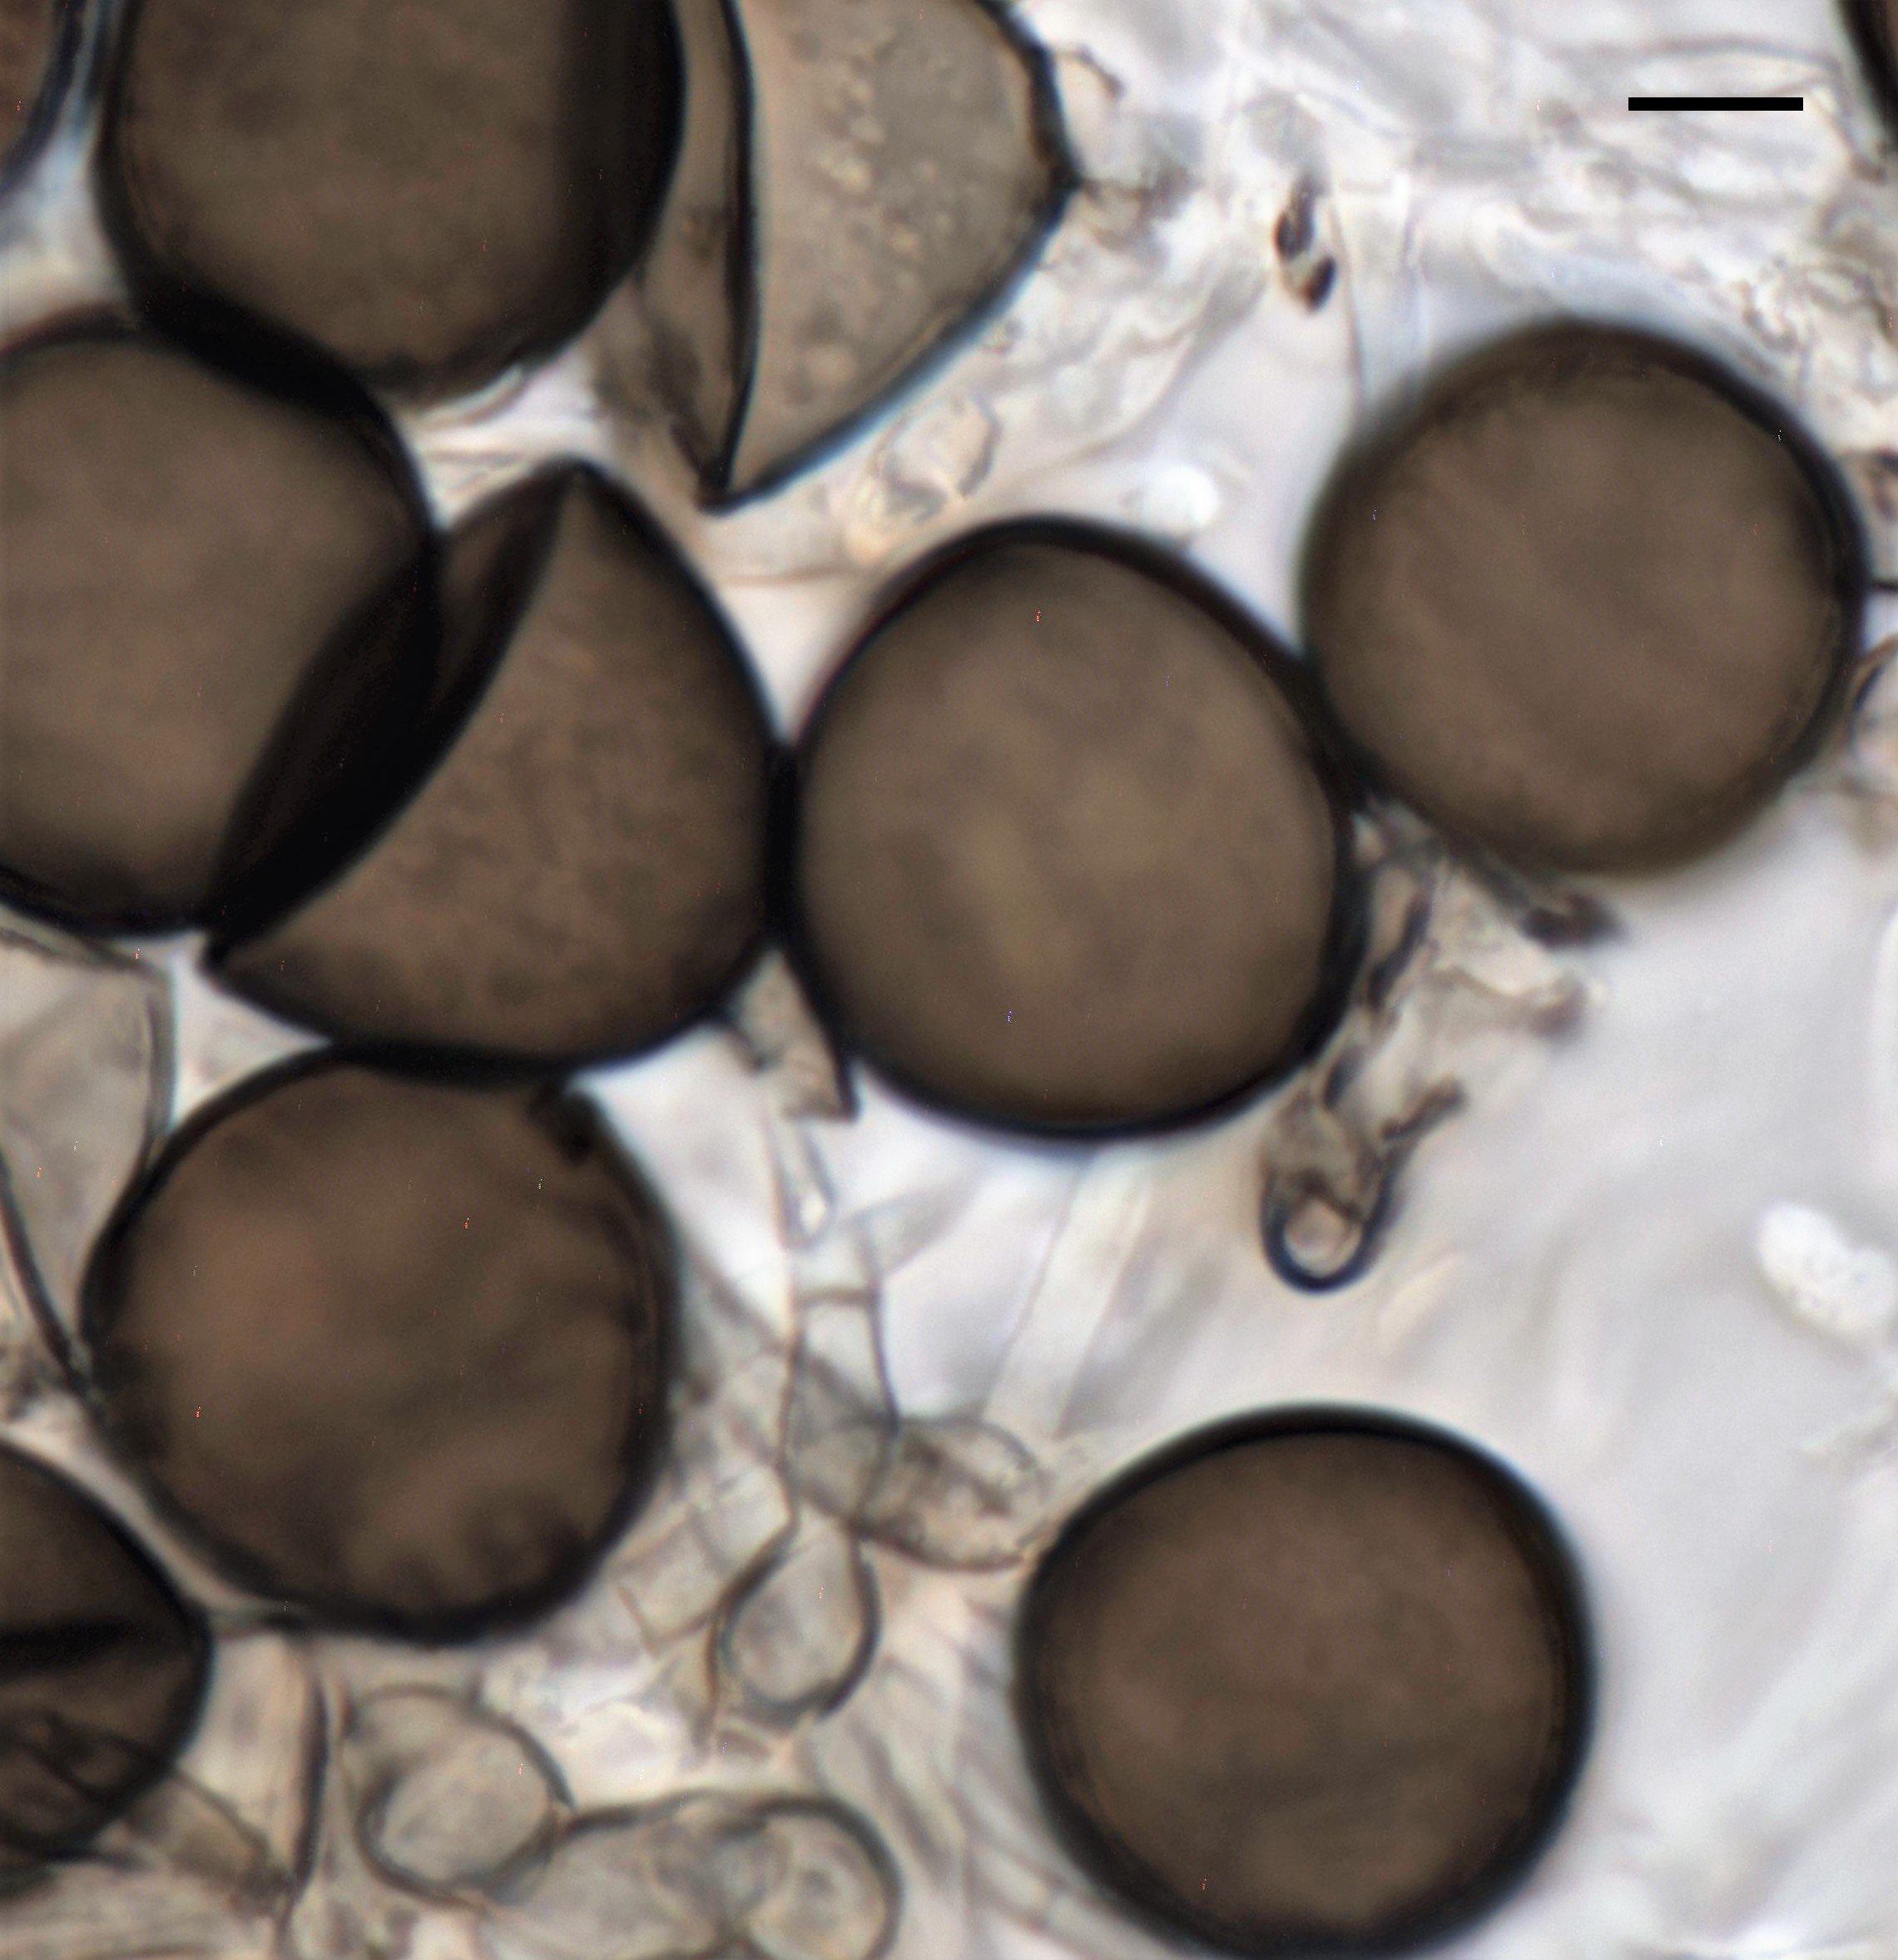
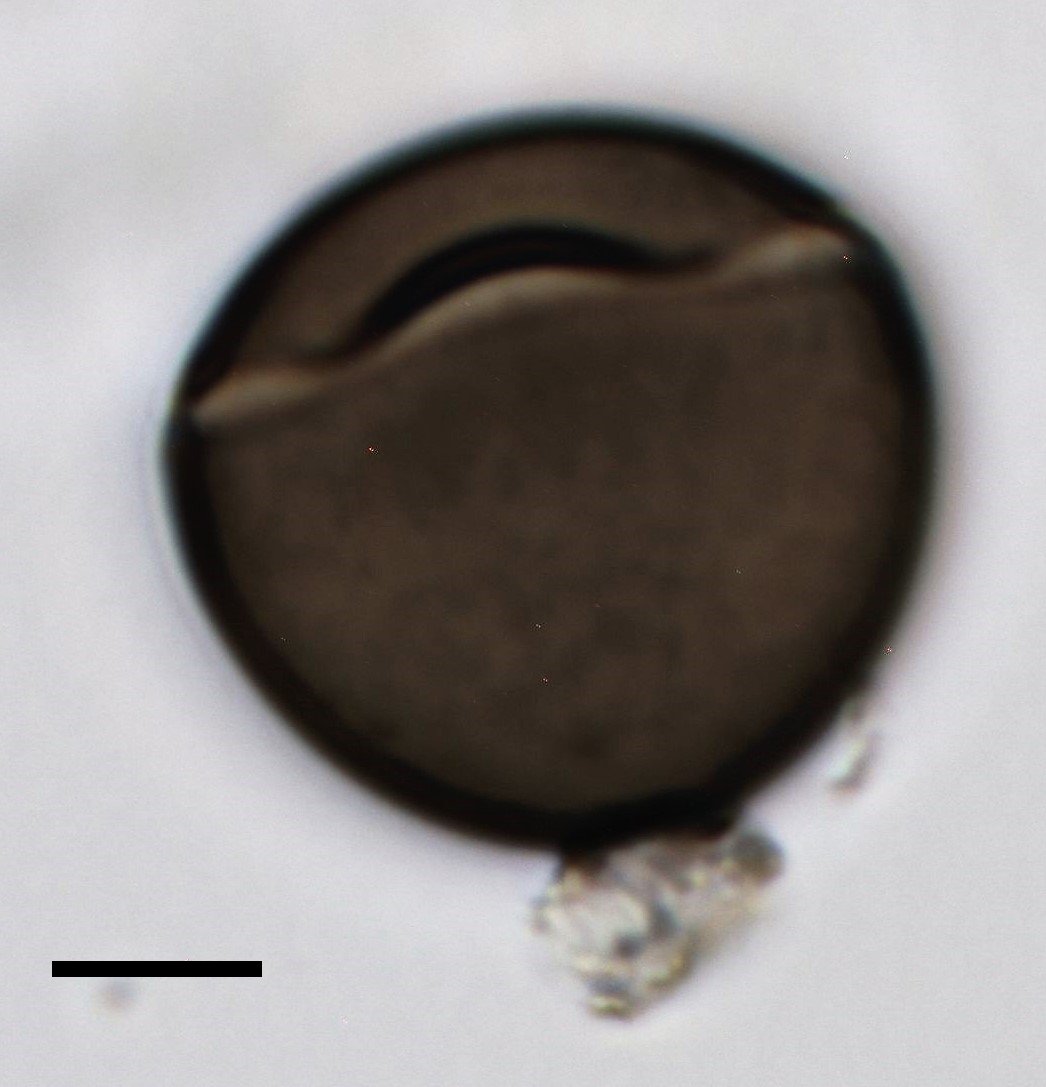
Conidios: globosos a obovoides, de color pardo oscuro, con una cicatriz central en la base, de (15–)16–20(–21) µm en vista frontal y (14–)15–18(–19) µm en vista lateral (n = 40).
Células estériles: grises, de contorno irregular, angulosas y lobuladas, de (15–)17–41(–42) × (10–)14–23(–25) µm (n = 30).
 Observaciones
Apiospora hysterina fue estudiada sobre tallos muertos de Phyllostachys aurea recolectados en Esporles y Sóller (Mallorca), así como en Santiago de Compostela (Galicia). Las colecciones de Mallorca proceden de Esporles (29 de julio de 2017), el Jardín Botánico de Sóller (24 de octubre de 2017) y Sóller (15 de marzo de 2018).
En el estudio taxonómico de Pintos et al. (2019), basado también en los trabajos de Samuels (1981), Sivanesan (1983), Kirk (1986) y Réblová et al. (2016), se consideraron sinónimos de esta especie los taxones anteriormente denominados Apiospora bambusae, A. setosa, A. tintinnabula y Scyphospora phyllostachydis.
Filogenéticamente, Apiospora hysterina está próxima a A. yunnanum, de la que se diferencia morfológicamente por presentar ascos más estrechos (76–115 × 20–28 µm frente a 85–100 × 30–35 µm), conidióforos que pueden superar los 90 µm de longitud y células estériles lobuladas. En A. yunnanum, los conidióforos no superan los 50 µm y las células estériles están ausentes.
Con el propósito de ampliar el estudio filogenético y disponer de marcadores moleculares adicionales, se solicitó el cultivo ex-tipo ICMP 6889, procedente de una colección sobre tallos muertos de Bambusa sp., realizada en Paeroa, Waikato (Nueva Zelanda), el 28 de febrero de 1980 por E.H.C. McKenzie y P.R. Johnston. Este material se incorporó al estudio de Pintos et al. (2019), en el que se obtuvieron secuencias de ITS, LSU, TUB2 y TEF1-α, contribuyendo a la caracterización molecular y delimitación taxonómica de la especie.
La investigación formó parte de los estudios taxonómicos y filogenéticos destinados a esclarecer la delimitación de los géneros Apiospora y Arthrinium, cuya separación fue posteriormente respaldada mediante análisis moleculares (Pintos & Alvarado, 2021).
 Registros en GenBank
Secuencias de ADN generadas en nuestros estudios.
📖 Bibliografía
Pintos Á, Alvarado P, Planas J, Jarling R (2019). Six new species of Arthrinium from Europe and notes about A. caricicola and other species found in Carex spp. hosts. MycoKeys 49: 15–48. DOI: 10.3897/mycokeys.49.32115 .
Pintos Á, Alvarado P (2021). Phylogenetic delimitation of Apiospora and Arthrinium. Fungal Systematics and Evolution 7: 197–221. DOI: 10.3114/fuse.2021.07.10 .
Samuels GJ, McKenzie EHC, Buchanan DE (1981). Ascomycetes of New Zealand. 3. Two new species of Apiospora and their Arthrinium anamorphs on bamboo. New Zealand Journal of Botany 19: 137–149.